


タンパク質の研究における最初のステップは、対象となる正確な遺伝子配列を取得することです。配列を取得した後、目的タンパク質の発現を実現するためのプラスミド構築を行うことができます。
プラスミド構築は遺伝子工学とも呼ばれ、まずポリメラーゼ連鎖反応(PCR)により選択した外来遺伝子の DNA を増幅するところから始まります。次に、制限酵素と呼ばれる特定の酵素を用いてベクターと外来 DNA 断片の両方を切断し、DNA リガーゼによりこれらの断片を結合させて宿主細胞に導入します。その後のスクリーニングプロセスで正しい組換えクローニングプラスミドを同定し、宿主細胞内での標的遺伝子の正確な発現を保証します。
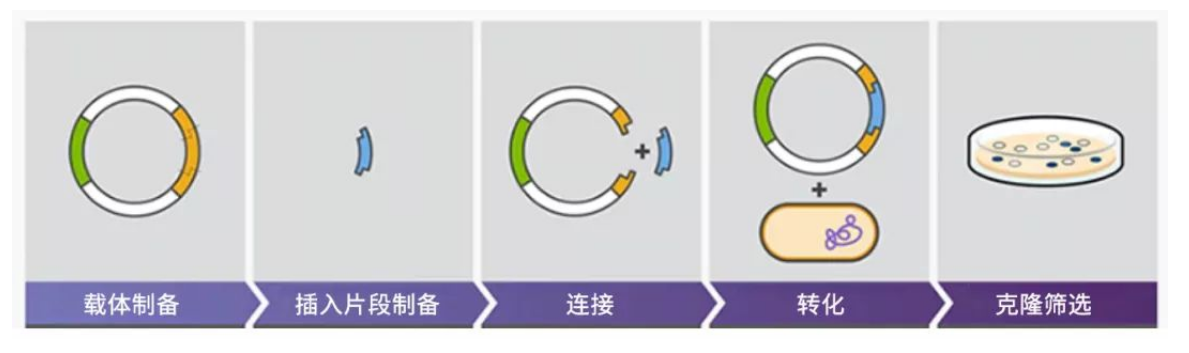
図 1:プラスミド構築プロセスの模式図
1. 適切なベクターの選択方法
ベクターは通常、クローニングベクターと発現ベクターの 2 種類に大別されます。
クローニングベクター
ほとんどのクローニングベクターは高コピーベクターであり、外来遺伝子をクローニングベクターのプラスミドに連結し、原核生物の細菌内に導入することで大規模な複製とクローニングを行うことができます。主な目的は、標的遺伝子断片を保存することです。
クローニングベクターを選択する際には、以下の点に注意する必要があります。
① 自律複製能と高コピー数を有すること
② スクリーニングが容易な選択マーカーを保有すること
③ 外来遺伝子挿入のため、複数の制限酵素に対する単一認識配列を含むこと
④ 細胞内への導入と効率的な増殖を容易にするため、15 キロ塩基対(kb)未満のベクターを優先的に選択すること
⑤ 安全対策:クローニングベクターは宿主範囲が限定的であり、宿主内での組換え、伝達、有害形質の発生を回避し、遺伝子組換えを行った宿主外で自由に増殖しないこと
発現ベクター
発現ベクターは、挿入された外来 DNA 配列を転写・翻訳してポリペプチド鎖にするために特別に設計されたクローニングベクターです。プロモーター、リボソーム結合部位、クローニングサイト、転写終結シグナルといった、特異的な発現システムエレメントを含んでいます。
発現ベクターは発現形式に基づき、主に以下の 4 種類に分類されます。
非融合発現ベクター:例 PKK223-3
分泌型発現ベクター:例 PINIII-ompA1
融合タンパク質発現ベクター:例 PGEX
封入体型発現ベクター:例 pBV220
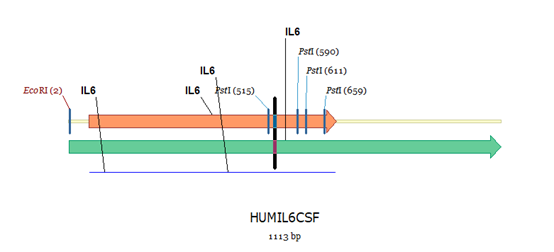
図 2:遺伝子断片の選択
2. プライマー設計のルール
PCR により標的遺伝子を増幅する際、プライマー設計は非常に重要な要素となります。
① プライマーの最適な長さは 18~30bp 程度で、一般的に使用される長さは 20~22bp です。
② プライマーの Tm 値は 60℃前後とし、2 本のプライマー間の Tm 値は近い値に保ち、その差を 5℃以内に抑える必要があります。
③ GC 含量の基準は通常 40%~60%、または 45%~55% とされています。
④ プライマー自体に 4 つ以上の連続した相補的塩基を含まないようにし、ヘアピン構造やプライマーダイマーの形成を回避します。
⑤ プライマーの 3' 末端は GGG や CCC といった連続した繰り返し塩基を避けます。これらはミスマッチの原因となるため、最後の塩基は G または C とすることが最適です。
⑥ プライマーの 5' 末端には増幅の特異性に影響を与えない範囲で制限酵素認識配列を付加します。制限酵素認識配列に応じて異なる種類・数の保護塩基を付加する必要があり、通常 3 塩基追加することで制限酵素認識配列を保護するニーズを満たすことができます。
⑦ 上流と下流のプライマーにはそれぞれ異なる制限酵素認識配列を組み込みます。同一の制限酵素認識配列を使用した場合、標的遺伝子断片が逆方向に連結され、遺伝子配列の正常な発現に影響を与える可能性があります。
3. PCR 増幅でよくある課題
PCR による遺伝子増幅は基本的に平易なプロセスですが、常に 100% の成功率が保証されるわけではありません。増幅中にさまざまな問題が発生し、結果の特異性、純度、忠実度に影響を与える可能性があります。
a. プライマーダイマーの形成と非特異的バンド
プライマーダイマーやサイズが不正な非特異的バンドが存在すると、増幅の特異性が損なわれます。以下の方法で対応してください。
● テンプレートとプライマーの濃度を低下させる
● マグネシウムイオン濃度を調整する
● 酵素の使用量を調整する
● アニーリング温度を上昇させ、特異性を高める
b. ゲルバンドのスメア化
● ゲルバンドが散らばって見える場合、これは多くの場合、テンプレートの不純物、反応成分の不均衡、アニーリング温度の低さ、サイクル数の過多などの要因によるものです。この問題を修正するには、以下の点を確保してください。
● テンプレートの純度
● 反応成分の適切な比率
● 最適なアニーリング温度
● 標的に応じた適切なサイクル数
c. 長鎖遺伝子の増幅における課題
● 長鎖の遺伝子断片を増幅する場合、点突然変異やミスマッチの発生率が高くなる傾向があります。これを克服するためには、以下の点が不可欠です。
● 高い増幅能を持つポリメラーゼを選択する
● エラーを最小限に抑えるため、高い忠実度と信頼性を持つポリメラーゼを選択する
● 増幅プロセス全体を通じて厳格な品質管理を実施する
4. その他の留意点
酵素消化とライゲーションの各ステップを実施する際には、質的・量的に十分な酵素活性を確保する必要があります。例えば、二重酵素消化を行う場合、できる限り同種のバッファーを使用する必要があります。一般的な酵素使用量は 40U ユニット以上(使用量は総体積の 1/10 を超えてはならない)とし、酵素活性が十分であり、切断プロセスが完全に行われることを保証します。
ライゲーション効率を高めるため、以下の計算式に基づき、添加する標的断片とベクターの量を算出することができます。標的断片量(ng)=(ベクター量(ng)× 標的断片長(kb))/(ベクター DNA 断片長(kb))× 標的断片とベクターのモル比(1:3~1:8)
構築したベクターはコンピテントセル(TOP10、DH5α、BL21 など)に導入し形質転換を行います。コンピテントセルは使用時にできる限り新鮮な状態を保ち、凍結融解の繰り返しを避けるとともに、氷上でのインキュベーション、ヒートショックの時間を厳密に制御する必要があります。その後、薬剤耐性選抜、コロニー PCR、酵素消化、シーケンシングなどのプロセスを経て形質転換の成否を検証し、最終的に正しい組換えクローニング遺伝子断片を取得します。
5. 適切な菌株とベクターの選択(詳細は記事末尾のリストを参照)
大腸菌菌株リスト
| No. | strain | annotation | Resistant |
| 1 | BL21 (DE3) | most used | No |
| 2 | Rosetta (DE3) | Rare codonsAUA, AGG, AGA, CUA, CCC, GGA | Cl |
| 3 | Rosetta2 (DE3) | Rare codons AUA, AGG, AGA, CUA, CCC, GGA and CGG | Cl |
| 4 | Origami 2 (DE3) | Disulfide bonds and rare codons | StrR, Tet |
| 5 | C41 (DE3) or C43 (DE3) | hydrophobic protein | No |
| 6 | Arctic (DE3) | TPN30 & TPN60 molecular chaperones | Tet, Cam |
| 7 | Tuner (DE3) | Precisely control the expression level through IPTG,0.1mM IPTG | No |
| 8 | BL21 (DE3) pLysS | Reduce background expression of toxic proteins | Cl |
| 9 | Rosetta(DE3) pLysS | Reduce the background expression of toxic proteins, rare codonsAUA, AGG, AGA, CUA, CCC, and GGA. | Cl |
| 10 | BL21(DE3) del- slyXD | BL21(DE3)knock out slyXD | No |
| 11 | B834(DE3) | Met-deficient strain | No |
| 12 | T7 pL _ | Resistant to T1 phage infection | cl |
| 13 | BL21star (DE3) | ||
| 14 | origamiB (DE3) | disulfide bond | KanR,TetR |
| 15 | Origami 2 (DE3) pLysS | Based on Origami 2 (DE3), pLysS is added to inhibit local expression. | Cl, StrR, Tet |
| 16 | Dh5α | clonal strains | No |
| 17 | Dh5α-T1 | Resistant to T1 phage infection | No |
| 18 | Dh10bac | BacmidPreparation | Tet, gentamicin |
| 19 | BL21-Gold (DE3) | Can be used as both a protein expression strain and a plasmid cloning strain | No |
Plasmid list
| name | length | Resistance | special properties |
| PAO815 | 7709bp | Amp | yeast expression |
| wxya | 44741bp | Amp | Adenovirus expression |
| wxya | 42410 bp | Amp | Adenovirus expression |
| pAAV -MCS | 4.7kbp _ | Amp | mammalian cell expression |
| pBacPAK8 | 5.5kbp__ | Amp | Baculovirus expression |
| PBI121 | 13.0kbp_ | Kan | plant cell expression |
| pBV220 | 3665bp | Amp | prokaryotic expression |
| pCAMBIA 1300 | plant cell expression | ||
| pCAMBIA 1301 | 11837bp | Kan | plant cell expression |
| pCAT3-Basic | 4047bp | Amp | |
| pcDNA 3 | 5446bp | Amp | mammalian cellexpression |
| pcDNA 3.1(+) | 5428 bp | Amp | mammalian cell expression |
| pcDNA 3.1/ mys-HisA | 5494bp | Amp | mammalian cell expression |
| pCl -neo | 5472 bp | Amp | mammalian cell expression |
| pCMV -MCS | 4.5kbp _ | Amp | mammalian cell expression |
| pET-3a | 4640 bp | Amp | E. coli expression |
| pET-11a | 5677 bp | Amp | E. coli expression |
| pET-15b (+) | 5708 bp | Amp | E. coli expression |
| pET-20b (+) | 3716bp | Amp | E. coli expression |
| pET-22b (+) | 5493bp | Amp | E. coli expression |
| pET-23a (+) | 3666bp | Amp | E. coli expression |
| pET-23b (+) | 3665bp | Amp | E. coli expression |
| pET-23c (+) | 3664bp | Amp | E. coli expression |
| pET-23d (+) | 3663bp | Amp | E. coli expression |
| pET-28a (+) | 5369 bp | Kan | E. coli expression |
| pET-28b (+) | 5368 bp | Kan | E. coli expression |
| pET-28c (+) | 5367 bp | Kan | E. coli expression |
| pET-30a (+) | 5422 bp | Kan | E. coli expression |
| pET-30b (+) | 5421 bp | Kan | E. coli expression |
| pET-30c (+) | 5423bp | Kan | E. coli expression |
| pET-31b (+) | 5742 bp | Amp | E. coli expression |
| pET-32a (+) | 5900bp | Amp | E. coli expression |
| pET-32b (+) | 5899 bp | Amp | E. coli expression |
| pET-32c (+) | 5901 bp | Amp | E. coli expression |
| pET-39b | 6106bp | Kan | E. coli expression |
| pET-42a | 5930 bp | Kan | E. coli expression |
| pGAPZ-aA | 3147 bp | Zeo | yeast expression |
| pGBKT7 | 7.3kbp _ | Kan | yeast expression |
| pGEM3Zb | prokaryotic expression | ||
| pGEM3Zf (+) | prokaryotic expression | ||
| pGEM7Zf (+) | prokaryotic expression | ||
| pGEX-2T | 4969 bp | Amp | prokaryotic expression |
| pGEX-4T-1 | 4969 bp | Amp | prokaryotic expression |
| pGFP-N2 | 4732bp | Kan | Mammalian cells fluorescent protein expression |
| pEGFP-C1 | 4731bp | Kan | Mammalian cells fluorescent protein expression |
| pEGFP-C3 | 4727bp | Kan | Mammalian cells fluorescent protein expression |
| pEGFP-N1 | 4733bp | Kan | Mammalian cells fluorescent protein expression |
| pLEGFP-N1 | 6892 bp | Amp | Mammalian cells fluorescent protein expression |
| pGL3-Basic | 4818bp | Amp | |
| pGL36 | |||
| nnJC | 6620 bp | Amp | retroviral expression |
| nnJC | 5.6kbp _ | Amp | retroviral expression |
| nnJC | 5.9kbp _ | Amp | retroviral expression |
| ikB | 6.1kbp _ | Amp | retroviral expression |
| pMAL-p2x | 6721 bp | Amp | Prokaryotic fusion protein expression |
| pMAL-c2x | 6721 bp | Amp | Prokaryotic fusion protein expression |
| pPIC3.5K | 9004bp | Amp/Kan | yeast expression |
| pPIC9 | 8024 bp | Amp | yeast expression |
| pPIC9K | 9276 bp | Amp | yeast expression |
| pPIC aA | 3593bp | Zeo | yeast expression |
| pQpK _ | 5387bp | Amp | Mammalian cells fluorescent protein expression |
| pQE-30 | 3461bp | Amp | prokaryotic expression |
| pQE-9 | 3439bp | Amp | prokaryotic expression |
| pRevTRE | 6487bp | Amp | retroviral expression |
| pSE420L | 4617bp | Amp | |
| i _ | Amp | prokaryotic expression | |
| pTac I (BamH I) | Amp | prokaryotic expression | |
| pTAL -Luc | 4956bp | Amp | mammalian cell expression |
| pTWIN1 | 7375 bp | Amp | |
| pTXB1 | 6706bp | Amp | |
| pVAX1 | 2999 bp | Kan |